

서 언
재료 및 방법
식물재료의 재배관리
단일조건과 적심처리
개화단계 및 생장특성
개화특성과 식물체의 도복
통계분석
결과 및 고찰
개화유도와 개화단계적 특성
생육과 개화특성간 관계
도복 발생과 분화소재로서의 재배 가치 평가
적 요
서 언
꿀풀과(Lamiaceae) 향유속(Elsholtzia) 식물은 아시아, 북미, 유럽, 아프리카 등 세계적으로 널리 분포하고 있으며(Guo et al., 2012), 이 중 꽃향유(Elsholtzia splendens Nakai ex F. Maek.)는 한해살이풀로 주로 중국 양쯔강 중·하류 지역(Cai et al., 2014)과 한국(Lee et al., 2010)에 분포하는 것으로 알려져 있다. 또한 중국에서는 고지대에서 자라는 종도 있으나 200~300 m 저지대에서도 생존하고, 일반적으로 초원, 황무지, 숲, 따뜻한 지역의 계곡 등 여러 지역에 분포하는 야생종의 형태로 발견된다(Wu et al., 1977).
향유속 식물은 일부 국가에서 식품, 향신료, 화장품 등의 원료로 사용되어 왔으며(Guo et al., 2012), 이중 꽃향유는 국내의 경우 오래전부터 소염, 해열 등 항균 효과가 있어 한약재로 사용되어 왔다(Kim et al., 1993; Yoon, 1992). 또한 꽃과 잎에는 다량의 플라보노이드가 함유되어 있고(Um and Kim, 2007), limonene, naginata ketone, a-humulene 등 다양한 향기 성분도 포함하여 향료로서 개발 가능성도 높다(Jeong et al., 2004). 최근에는 꽃 추출물에 포함된 apigenin이 비만과 관련 질환에 잠재적 치료제로 고려되고 있기도 하다(Lee et al., 2025). 중국의 경우, 꽃향유가 구리(CuO)를 흡수하여 축적하는 특성(Shi et al., 2014)이 있어 생리대사 작용, 광산 등 오염 토양에서의 생태적 특성에 관한 연구(Yang et al., 2015; Zhang et al., 2010a, 2010b)가 활발하다. 특히 꽃향유의 꽃은 많은 소화가 한쪽으로 치우친 수상화서(spicate inflorescence)로 홍자색을 띄며(Jeon and Hong, 2006), 아름다운 꽃의 형태, 색과 함께 향기로운 방향성 물질을 발산하여 관상용 식물(Im et al., 2021)로서 가치가 크다. 이처럼 꽃향유는 식용, 약용, 관상용 뿐만 아니라 생태 복원 및 토양 정화에 유망한 후보 식물(Moon et al., 2025)로 그 용도가 매우 폭넓어 치유농업 등 농산업적 활용도가 큰 자원으로 평가받고 있다(Choi et al., 2024).
국내 야생화 시장의 생산량과 판매액은 2018년(90만주, 4.4억원) 대비 2024년(300만주, 10.1억원) 각각 약 3.3배, 2.3배 증가하여 지속적으로 확대되고 있다(MAFRA, 2025). 그러나 시장 수요 증가와 우리 자생자원인 꽃향유의 높은 활용 가치에도 불구하고 현재까지의 연구는 생태적 특성(Chang et al., 2003)과 함유성분(Jeong et al., 2004; Um and Kim, 2007)에 한정되어 있으며, 산업적 활용을 위한 생산 기술 및 이용 방안에 관한 연구는 미흡한 실정이다. 이는 꽃향유가 생식생장 전환과 개화를 위해 단일 조건을 요구하는 특성(Chang et al., 2003; Sohn and Kim, 2003)을 가지며, 초장이 약 80~143 ㎝에 달하는 형태적 특성(Choi et al., 2024)으로 인해 생육 조절이 용이하지 않다는 점 등 재배기술이 체계적으로 확립되지 않은데 기인하는 것으로 판단된다. 또한 다양한 화훼식물의 수입 증가(KCS, 2025) 역시 국내 자생자원의 상업적 활용 연구를 제한하는 요인으로 작용하였을 가능성이 있다. 따라서 본 연구는 꽃향유의 단일처리 시기와 적심 처리에 따른 생육과 개화 반응을 구명하고, 이를 기반으로 초본성 분화 소재로의 이용 가능성과 상업적 가치를 평가하고자 수행되었다.
재료 및 방법
식물재료의 재배관리
식물재료인 꽃향유는 2019년 임실군 소재 농업인으로부터 채취한 종자를 전북특별자치도농업기술원 자원식물연구소(남원시 운봉읍, 35°24’44”N, 127°31’36”E, ASL 507 m)에서 매년 증식하여 2023년 자가 채종한 종자를 이용하였다. 단일과 적심처리할 묘 생산을 위해 105공 plug tray(1공 용적 30 mL)에 충분히 수분을 흡수한 원예용상토(등록번호: 충북 음성 016-가-11014)를 충진하여 2024년 4월 1일 파종하였다. 파종 직후 가온이 가능한 육묘 온실 내에서 평균온도 27.7±2.9℃로 관리하였다(Fig. 1A).
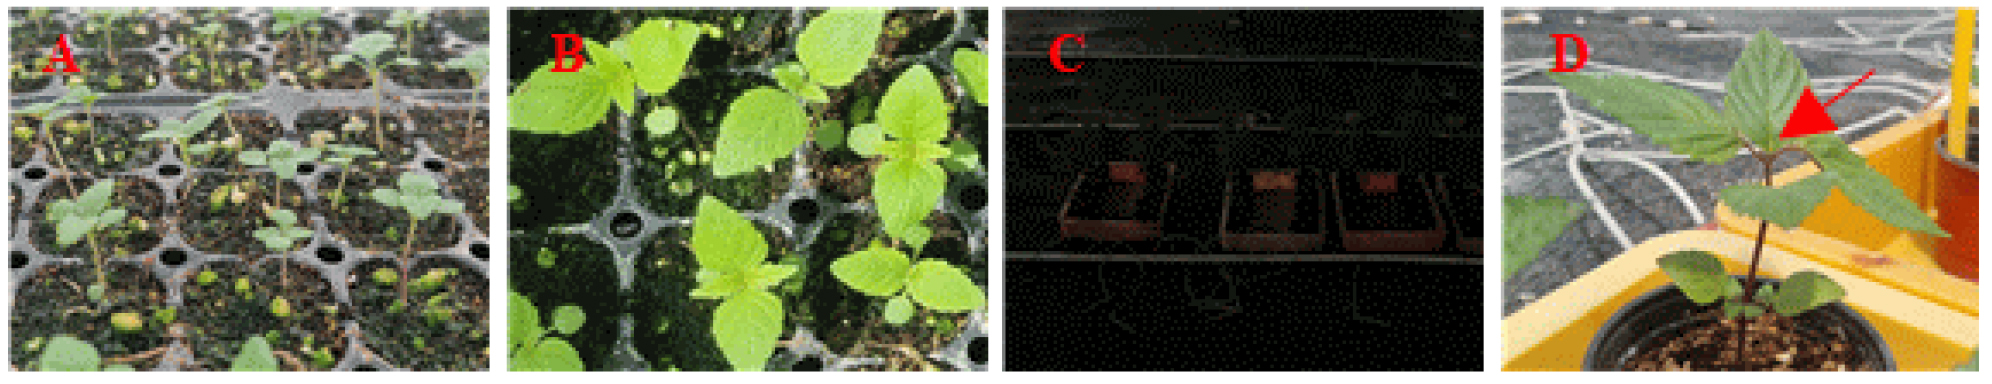
Fig. 1
Photographs showing seedling management (A and B) and two treatments (C and D) applied to the experimental materials. A: seedlings in 105-cell trays, B: plants at transplanting, C: dark treatment for short-day induction, D: plants pinched after six fully expanded leaves. Red arrows indicate the pinching site.
이후 본엽 2엽이 완전히 전개되고, 3~4번째 엽장이 약 1~2 ㎝ 정도 생육한 시점(Fig. 1B)에 직경 10 ㎝의 pot에 육묘와 동일한 상토를 충진하여 2024년 5월 18일 이식하였다. 이식 후에는 실험재료의 환경스트레스를 줄이고, 생육 쇠약 또는 고사 개체를 분리하기 위해 약 5일간 육묘 방법과 동일한 조건에서 순화하였다. 본 실험에 사용한 식물재료는 평균 초장 14.3±1.1 ㎝, 주경 1.2±0.1 ㎜인 건전하고 균일한 묘를 처리당 10개체를 실험에 사용하였다.
단일조건과 적심처리
실험처리는 적심시기만 달리한 적심 단독처리구와 단일과 적심의 복합처리구로 구분하여 생육과 개화특성에 대해 대조구와 비교하였다.
단일처리는 외부 광 차단을 위해 흑백비닐(외부 백색, 내부 흑색)로 피복한 단동 비닐하우스에서 실시하였다. 광주기의 경우 암 조건(Fig. 1C)은 매일 17:00부터 익일 09:00까지 16시간 동안 유지하였으며, 09:00~17:00까지는 자연광에 노출하였다. 대조구와 적심 단독처리구의 경우 자연상태의 광주기 조건을 적용하였다. 적심처리는 꽃향유가 대생(opposite)으로 마디마다 2개 잎이 마주보며 발생하는 특성을 고려하여 수행하였다. 남기고자 하는 마디 바로 위 2개 잎이 약 1~2 ㎝ 전개된 시점에 상위 잎을 포함한 정단부를 제거하였으며, 남기는 잎 수는 2~20엽(2엽씩 10마디)까지 2엽 단위로 1회 적심 처리하였다(Fig. 1D). 단일과 적심 복합처리구는 적심 처리 직후 단일조건에 적용하였으며, 개화기에 도달되는 시점에 단일처리를 중단한 후 대조구와 동일한 조건으로 관리하였다.
모든 실험재료는 동일한 시설에서 동일한 재배방법으로 관리되었다. 추가적으로 암 처리 하우스의 경우, 암막 설치로 인한 시설 야간 내부 온도가 상승할 가능성을 고려하여 출입구에 환기팬 2대를 설치하였고, 시설 내·외부의 공기 순환이 원활하도록 관리하였다. 단일과 적심처리 시점부터 실험종료까지의 암 처리 하우스와 대조구 및 적심 단독 처리구 하우스의 평균온도는 각각 26.9℃, 24.9℃였다.
개화단계 및 생장특성
개화단계(Choi et al., 2024)는 화서가 관찰되는 화서출현기(spike emergence), 개화기로 구분하였으며, 개화기는 수상화서(spike)의 70% 이상이 개화한 시점을 기준으로 판단하였다. 또한 파종일과 단일처리 개시일로부터 각각 화서출현기 및 개화기까지의 소요일수를 산출하여 전체 생육기간을 파악하고자 하였다.
생장특성으로는 초장, 초폭, 주경(main stem)의 굵기 및 지경수를 개화기에 조사하였다. 초장은 지제부에서 주경 정단까지의 길이를 측정하였고, 초폭은 주경과 지경을 유인 또는 고정하지 않은 자연 상태에서 가로와 세로 폭을 각각 2회 측정한 후 평균값을 산출하였다. 주경의 굵기는 지제부로부터 약 5 ㎝ 높이에서 주경의 직경을 디지털 버니어캘리퍼스(CD-15APX, Mitutoyo Corp., Kawasaki, Japan)로 2회 측정하여 평균값을 산출하였다. 지경수는 주경에서 발생한 지경을 1차 지경, 1차 지경으로부터 발생한 지경을 2차 지경, 2차 지경으로부터 발생한 3차 지경으로 각각 구분하여 계수하였다.
개화특성과 식물체의 도복
개화특성은 화서수, 화서장, 화서폭, 화서경, 그리고 화서당 소화수를 조사하였다. 식물체당 화서수는 개체별로 형성된 전체 화서를 계수하였다. 화서장은 화서의 기부부터 선단까지의 길이를 측정하였으며, 화서폭은 화서 길이의 1/2 지점을 2회 측정한 후 평균값을 산출하였다. 화서경의 직경 또한 화서폭과 동일한 방법으로 측정하였다. 화서당 소화수는 식물체당 임의로 선정한 10개의 화서를 대상으로 각 화서에 착생한 모든 소화수를 계수하여 산출하였다.
식물체의 도복(lodging)은 포트 재배된 개체를 유인하거나 지지하지 않은 상태에서 기울어 쓰러지는 경우로 판단하였다. 또한 1차 지경 중 2~4번 지경이 화서의 하중으로 인해 처져 지면에 닿는 경우도 도복으로 간주하였다.
모든 조사는 식물체 개체를 반복 단위로 하여 처리당 10반복으로 수행하였으며, 완전임의배치법(completely randomized design)으로 배치하였다.
통계분석
조사된 자료의 통계분석은 SAS 9.4 (SAS Institute Inc., Cary, NC, USA)를 이용하여 수행하였다. 개화기 생육과 개화특성에 대한 산술평균과 표준오차를 산출하였다. 단일처리 여부와 적심처리 시기를 요인으로 하여 이원분산분석(two-way ANOVA)을 실시하고, 각 요인과 요인간 상호작용의 유의성을 P < 0.05, P < 0.01 수준에서 검정하였다. 또한 단일처리 여부에 따라 적심처리 효과를 비교하기 위해 평균간 차이를 P < 0.05 수준에서 평균간 다중비교를 수행하였다. 추가적으로 조사요인간 통계적 관계를 평가하고자 상관분석을 실시하였다. 모든 그래프는 Sigma Plot 16.0 (Systat Software Inc., Chicago, IL, USA)을 이용하여 시각화하였다.
결과 및 고찰
개화유도와 개화단계적 특성
꽃향유의 단일과 적심시기별 개화기와 개화소요일수를 조사한 결과(Table 1), 적심 단독처리구의 개화기는 10월 3일로 대조구와 동일하게 나타났다. 또한 파종일부터 화서출현기까지 158일, 개화기까지 185일 소요되어 적심시기가 전체 생육기간에 영향을 미치지는 않은 것으로 판단되었다.
Table 1
Effects of short-day treatment and pinching timing on flower induction and days to flowering in pot-grown Elsholtzia splendens.
|
Short-day treatment |
Pinching timing (leaf stage) |
Date of short-day treatment |
Flowering stage | SDT-SEz | SDT-FSy | SD-SEx | SD-FSw |
| Controlv | - | Oct. 3 | - | - | 158 | 185 | |
| Untreated | 2~20 | - | Oct. 3 | - | - | 158 | 185 |
| Treatment | 2 | May 22 | Jun. 27 | 17 | 36 | 68 | 87 |
| 4 | May 22 | Jun. 27 | 20 | 36 | 71 | 87 | |
| 6 | May 27 | Jul. 1 | 22 | 35 | 78 | 91 | |
| 8 | Jun. 7 | Jul. 14 | 22 | 37 | 89 | 104 | |
| 10 | Jun. 17 | Jul. 25 | 19 | 38 | 96 | 115 | |
| 12 | Jun. 21 | Aug. 1 | 19 | 41 | 100 | 122 | |
| 14 | Jul. 1 | Aug. 10 | 20 | 40 | 111 | 131 | |
| 16 | Jul. 8 | Aug. 21 | 20 | 44 | 118 | 142 | |
| 18 | Jul. 12 | Aug. 24 | 18 | 43 | 120 | 145 | |
| 20 | Jul. 13 | Aug. 29 | 27 | 47 | 130 | 150 | |
반면 단일과 적심을 복합처리한 경우에는 적심시기가 늦어질수록 적심처리 시점까지의 영양생장이 길어짐에 따라 단일처리 개시 시점 또한 지연되었고, 이에 따라 개화기가 점차 늦어지는 경향을 보였다. 더불어 적심처리 시점이 늦어질수록 파종일부터 화서출현기(평균 98.1일)와 개화기(평균 117.4일)까지의 소요일수도 지연되는 특성을 보였으나 대조구와 적심 단독처리에 비해서는 개화유도까지 빠른 편이었다. 단일과 적심이 복합 처리된 경우, 단일처리 시점부터 화서출현기와 개화기는 각각 20.4일(범위 17~27일), 39.7일(범위 35~47일) 소요되어 단일처리가 개화유도에 직접적인 영향을 미친 것으로 판단되었다. 결과적으로 단일과 적심 복합처리는 대조구에 비해 파종일부터 화서출현과 개화기까지의 소요일수를 각각 28~90일, 35~98일 단축하는 효과를 나타내었다. 추가적으로 단일 단독 처리의 경우 개화유도에는 효과적이나 왜화 효과가 없었다는 선행 보고(Sohn and Kim, 2003)를 근거로 본 실험에서는 제외하였다.
꽃향유는 일반적으로 춘화(vernalization) 과정을 필요로 하지 않으며, 단일 광주기(Thomas and Vince-Prue, 1997)에 의해 개화가 유도되는 식물로 알려져 있다(Chang et al., 2003). 본 실험에서도 8시간 단일조건이 20~40일 지속될 경우 화서 출현과 개화가 유도되어 선행 연구결과(Choi et al., 2024; Sohn and Kim, 2003)와 일치하였다. Choi et al. (2024)은 노지 재배조건에서 7월경 영양생장이 종료된 이후 누적된 단일조건에 의해 화서의 출현(9월)과 개화(10월)가 이루어짐을 보고한 바 있는데, 본 실험의 대조구 및 적심 단독처리구에서도 이와 유사한 생육 및 개화 양상이 관찰되었다.
한편 조기개화를 인위적으로 유도한 식물은 불충분한 영양생장에 의해 일정기간 개화가 지연되는 현상(Im et al., 2021)이 나타날 수 있으며, 꽃향유는 최소 4~6엽 이상 전개된 상태에서 단일조건이 주어졌을 때 개화가 시작된다(Sohn and Kim, 2003). 본 실험에서는 4엽 전개 시점에서 2엽를 남기고 적심한 후 단일처리를 실시한 경우에도 개화지연 현상이 발생하지 않아 단일처리에 반응하는 가장 빠른 시기가 4-6엽기라는 선행보고(Sohn and Kim, 2003)와는 다소 차이가 있었다. 이는 선행보고(4-6엽기)의 가장 빠른 단일처리 시점이 본 실험보다 늦었으며, 광주기를 감지하기 위한 첫 번째 잎의 출현과 발달시간을 고려하여 개화를 위한 최소한의 생장만 필요로 하는 종 특성(Im et al., 2021)에 기인하는 것으로 판단되었다.
추가적으로 모든 처리구에서 단일조건이 충족되지 않았을 경우에는 주경과 지경의 선단에서 어린 잎이 지속적으로 출현(Fig. 2A)한 후 절간이 신장하는 영양생장 양상이 관찰되었다. 반대로 단일조건이 충족된 경우에는 영양생장이 종료되고 생식생장으로 전환(Pyon et al., 2014)되어 화서의 출현(Fig. 2B)과 신장(Fig. 2C)이 육안으로 확인되었으며, 이후 초기 개화(Fig. 2D), 만개기(Fig. 2E)를 거쳐 낙화(Fig. 2F)에 이르는 일련의 과정을 통해 개화가 완료되었다(Choi et al., 2024). 또한 꽃은 홍자색을 보였으며, 화서를 기준으로 소화가 한쪽 방향으로 치우쳐 배열되는 특성(Jeon and Hong, 2006; Li and Hedge, 1994; Press, 1982)을 나타내었다.
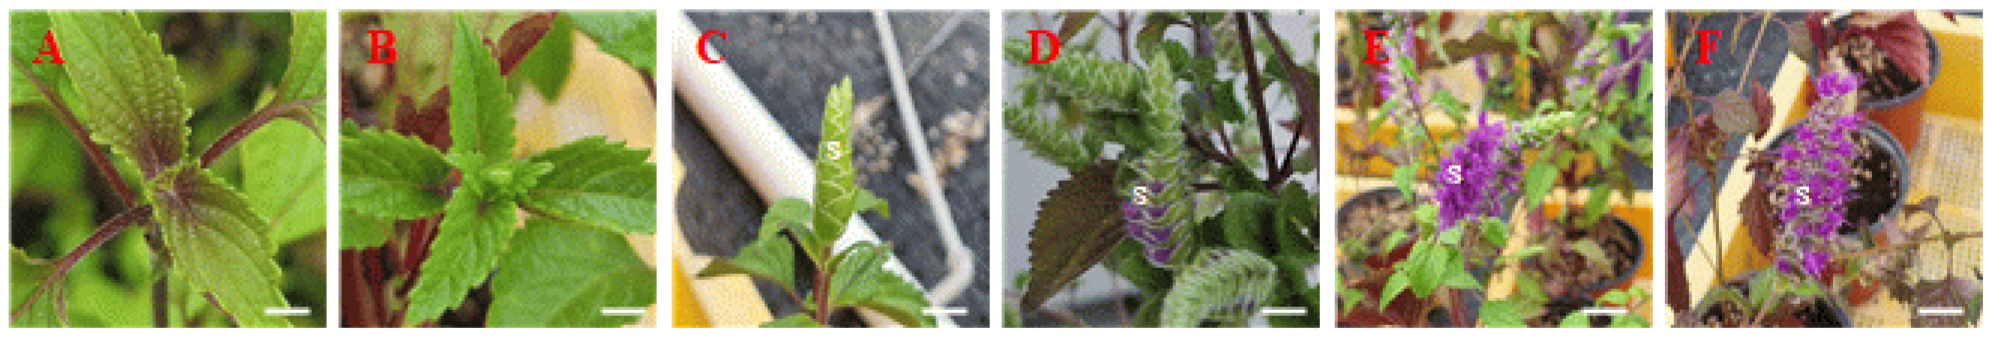
Fig. 2
Leaf emergence at the shoot apex (A) and subsequent flowering stages (B-F) of Elsholtzia splendens. A: leaf emergence, B: inflorescence emergence at the shoot apex, C: inflorescence elongation, D: early flowering, E: full bloom, F: flower senescence. Early and full bloom stages were determined when approximately 10% and 70% of the florets within the inflorescence were open, respectively. The white scale bar represents 1 ㎝. s: spike.
생육과 개화특성간 관계
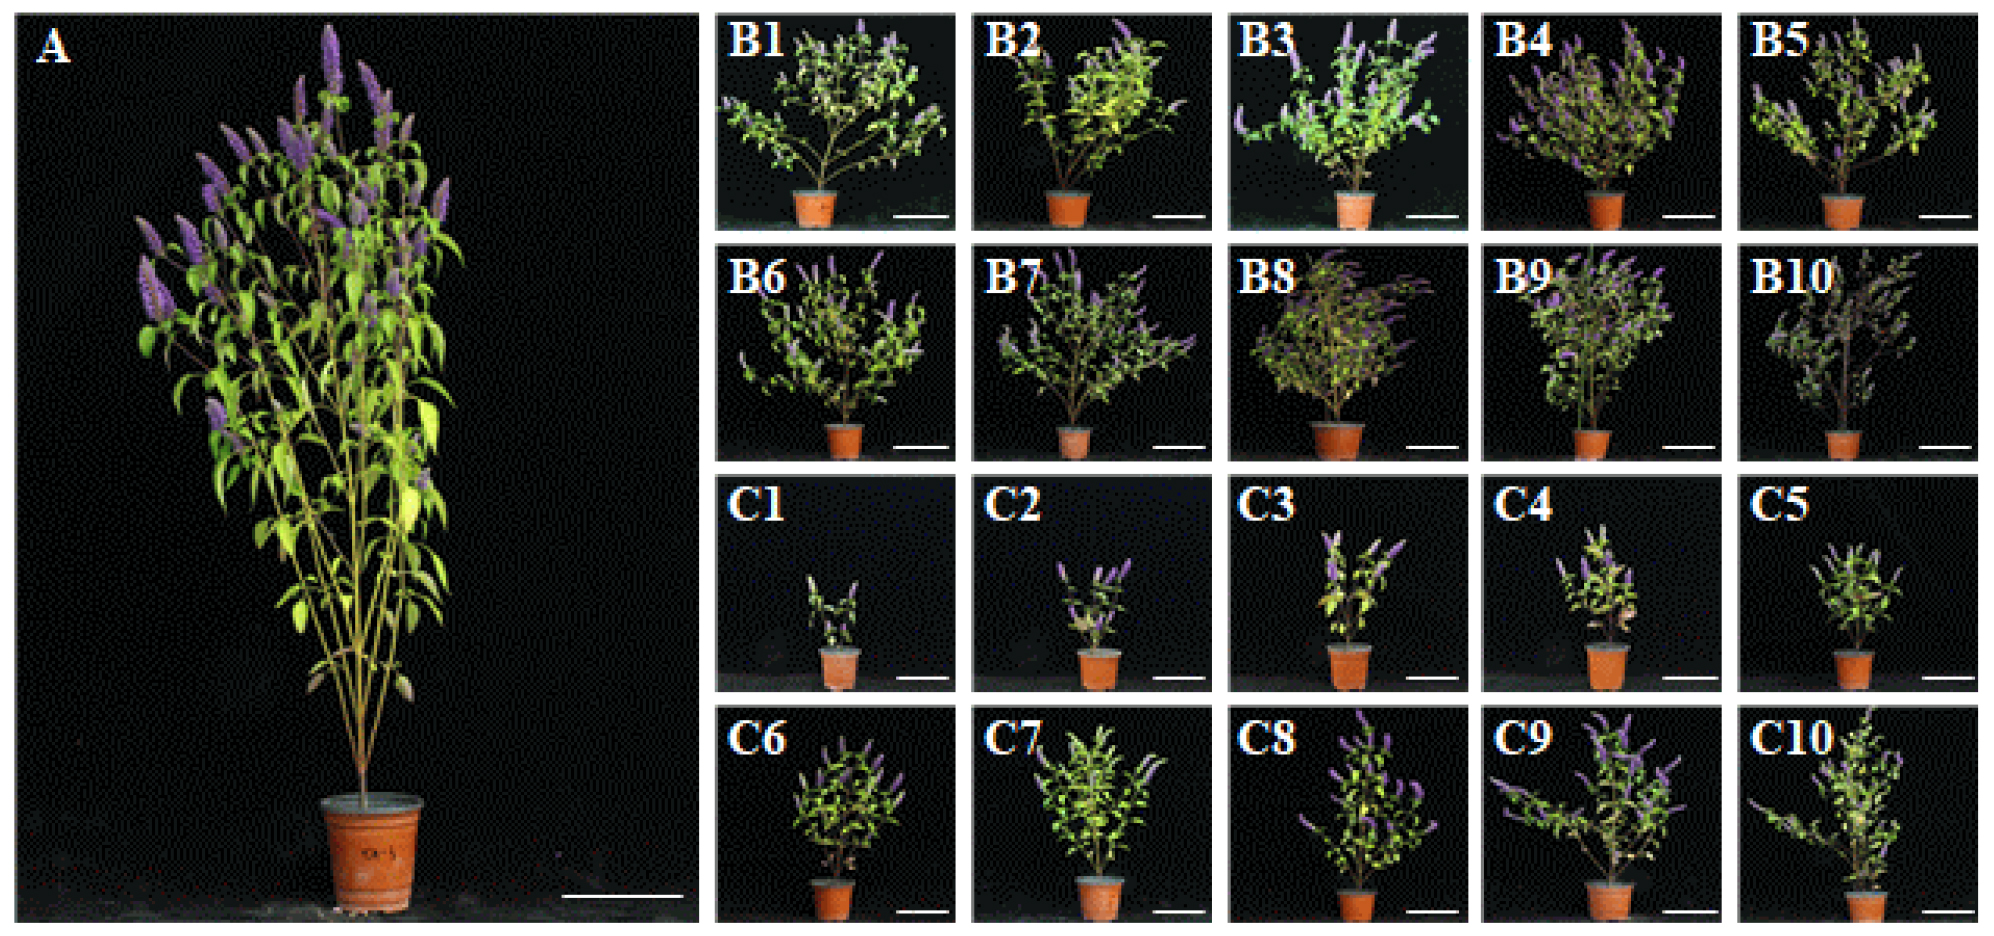
단일과 적심 복합처리에 따른 생육 반응 조사 결과는 Table 2와 같다. 적심 단독처리(Fig. 3B1-B10)의 경우, 초장, 초폭, 주경, 총 분지수 등은 적심시기가 늦어짐에 따라 유의미한 차이를 보이지 않았으며, 대체로 대조구(Fig. 3A)와 유사한 수준을 보였다. 반면 단일과 적심 복합처리(Fig. 3C1-C10)에서는 적심시기가 빠를수록 생육량이 감소하는 뚜렷한 경향을 보였으며, 대조구 대비 평균적으로 초장 61.9%, 초폭 65.5%, 주경 60.8%, 총 분지수 32.5% 수준으로 감소하였다. 이러한 결과는 단일과 적심 복합처리가 생육에 통계적으로 유의한 영향을 미쳤음을 시사한다.
Table 2
Effects of short-day treatment (16 h dark period) and pinching timing on growth characteristics of pot-grown Elsholtzia splendens at flowering.
|
Short-day treatment |
Pinching timing (leaf stage) |
Plant height (㎝) |
Plant width (㎝) |
Main stem diameter (㎜) |
Number of total branches |
Number of primary branches |
Number of 2nd and 3rd branches |
| Controlz | 68.7±0.56y | 36.9±0.55 | 4.9±0.05 | 108.2±1.29 | 21.2±0.21 | 87.0±1.29 | |
| Untreated | 2 | 57.3±1.11 ax | 29.8±0.59 b | 4.5±0.07 a | 101.9±2.16 ab | 2.0±0.00 j | 99.9±2.16 a |
| 4 | 57.6±0.47 a | 34.7±0.68 ab | 4.5±0.03 a | 93.6±1.29 b | 4.0±0.00 i | 89.6±1.29 a | |
| 6 | 55.6±0.61 a | 34.4±0.80 ab | 4.4±0.03 a | 90.7±1.13 b | 6.0±0.00 h | 84.7±1.13 a | |
| 8 | 58.7±0.95 a | 33.7±0.88 ab | 4.5±0.04 a | 95.1±2.27 b | 8.0±0.00 g | 87.1±2.27 a | |
| 10 | 58.4±1.44 a | 35.9±0.71 ab | 4.7±0.05 a | 102.2±1.49 ab | 10.0±0.00 f | 92.2±1.49 a | |
| 12 | 57.6±1.70 a | 34.6±0.51 ab | 4.8±0.04 a | 94.7±1.48 b | 12.0±0.00 e | 82.7±1.48 a | |
| 14 | 57.6±1.02 a | 36.8±0.74 ab | 4.6±0.05 a | 101.4±1.45 ab | 14.0±0.00 d | 87.4±1.45 a | |
| 16 | 62.5±1.35 a | 34.5±1.29 ab | 4.5±0.05 a | 106.8±3.56 ab | 16.0±0.00 c | 90.8±3.56 a | |
| 18 | 62.4±1.60 a | 39.9±1.24 a | 4.6±0.08 a | 114.8±2.10 a | 18.0±0.00 b | 96.8±2.10 a | |
| 20 | 66.2±5.98 a | 39.2±6.51 ab | 4.3±0.05 a | 106.0±6.36 ab | 20.0±0.00 a | 86.0±6.36 a | |
| Treatment | 2 | 23.8±0.29 f | 11.8±0.27 e | 1.9±0.02 e | 9.6±0.18 g | 2.0±0.00 j | 7.6±0.18 g |
| 4 | 26.3±0.27 ef | 14.6±0.42 e | 2.1±0.02 e | 13.3±0.31 g | 4.0±0.00 i | 9.3±0.31 g | |
| 6 | 31.9±0.42 e | 21.2±0.36 d | 2.6±0.02 d | 17.4±0.39 g | 6.0±0.00 h | 11.4±0.39 fg | |
| 8 | 33.5±0.37 de | 21.2±0.74 d | 2.8±0.03 cd | 26.6±0.69 f | 8.0±0.00 g | 18.6±0.69 ef | |
| 10 | 39.6±0.68 cd | 24.1±0.71 cd | 2.9±0.03 c | 34.0±0.70 ef | 10.0±0.00 f | 24.0±0.70 de | |
| 12 | 42.7±0.62 c | 24.4±0.84 cd | 3.0±0.03 c | 39.0±0.50 de | 12.0±0.00 e | 27.0±0.50 cd | |
| 14 | 52.7±1.15 b | 23.0±0.57 d | 3.4±0.03 b | 46.6±0.98 cd | 14.0±0.00 d | 32.6±0.98 c | |
| 16 | 55.3±1.35 ab | 32.3±0.66 b | 3.6±0.03 b | 50.1±1.25 c | 16.0±0.00 c | 34.1±1.25 c | |
| 18 | 57.6±1.20 ab | 30.1±0.92 ab | 3.5±0.04 b | 71.3±1.36 b | 18.0±0.00 b | 53.3±1.36 b | |
| 20 | 62.3±1.73 a | 38.9±2.86 a | 4.2±0.19 a | 85.0±5.66 a | 20.0±0.00 a | 65.0±5.66 a | |
| Significant | |||||||
| Short-day treatment (A) | * | ** | ** | ** | ns | ** | |
| Pinching timing (B) | ns | ns | ns | ns | ** | ns | |
| A × B | ** | ** | ** | ** | ns | ** | |
개화 특성(Table 3) 중 총 화서수는 생육특성과 마찬가지로 적심 단독처리시 대조구와 유의미한 차이를 보이지 않았으나 단일과 적심 복합처리에서는 적심시기가 늦어질수록 증가하는 뚜렷한 경향을 보였다. 또한 적심처리의 영향보다는 단일처리에 의해 대조구 대비 화서장과 화서폭이 증가하였으며, 화서경은 더 두꺼워지는 경향을 보였다.
Table 3
Effects of short-day treatment (16 h dark period) and pinching timing on flower characteristics of pot-grown Elsholtzia splendens at flowering.
|
Short-day treatment |
Pinching timing (leaf stage) |
Number of spikes (per plant) |
Spike length (㎝) |
Spike width (㎜) |
Peduncle diameter (㎜) |
Number of florets (per spike) | ||||
| Controlz | 61.8±1.49y | 3.8±0.04 | 0.7±0.01 | 0.8±0.01 | 139±4.3 | |||||
| Untreated | 2 | 60.1±1.92 ax | 3.9±0.05 ab | 0.8±0.01 bcd | 1.1±0.02 ab | 166±4.8 ab | ||||
| 4 | 51.7±2.06 a | 4.3±0.06 ab | 0.8±0.01 bc | 1.0±0.01 b | 172±4.3 a | |||||
| 6 | 57.8±1.10 a | 4.4±0.07 a | 1.0±0.02 a | 1.3±0.02 a | 182±2.5 a | |||||
| 8 | 56.8±2.44 a | 4.1±0.07 ab | 0.8±0.01 ab | 1.1±0.02 ab | 186±6.1 a | |||||
| 10 | 64.0±3.25 a | 4.6±0.08 a | 0.7±0.01 bcd | 1.1±0.03 ab | 185±7.3 a | |||||
| 12 | 61.2±2.87 a | 4.2±0.06 ab | 0.8±0.01 bcd | 1.0±0.02 bc | 146±5.5 ab | |||||
| 14 | 56.3±2.68 a | 4.3±0.10 ab | 0.7±0.02 bcd | 1.1±0.02 ab | 155±5.5 ab | |||||
| 16 | 68.0±3.69 a | 4.0±0.04 ab | 0.8±0.01 bcd | 1.0±0.03 bc | 160±6.4 ab | |||||
| 18 | 62.0±2.13 a | 3.6±0.05 b | 0.6±0.01 cd | 0.7±0.01 d | 146±3.8 ab | |||||
| 20 | 59.3±4.17 a | 3.6±0.07 b | 0.6±0.01 d | 0.8±0.04 cd | 112±2.5 b | |||||
| Treatment | 2 | 6.7±0.21 d | 5.0±0.08 ab | 1.6±0.03 a | 1.4±0.02 abc | 148±2.2 bc | ||||
| 4 | 6.2±0.26 d | 5.0±0.03 ab | 1.5±0.02 a | 1.4±0.02 a | 140±1.0 bc | |||||
| 6 | 9.1±0.34 cd | 4.8±0.07 ab | 1.2±0.02 b | 1.4±0.01 a | 137±4.4 bc | |||||
| 8 | 10.4±0.35 cd | 4.7±0.06 b | 1.0±0.01 cd | 1.3±0.01 abc | 122±2.5 c | |||||
| 10 | 11.3±0.56 cd | 5.3±0.08 ab | 1.0±0.02 cd | 1.4±0.02 ab | 176±3.3 b | |||||
| 12 | 11.5±0.17 cd | 5.4±0.08 ab | 1.1±0.02 bc | 1.2±0.01 bc | 165±3.9 b | |||||
| 14 | 16.8±0.53 c | 5.5±0.05 a | 1.1±0.01 bc | 1.3±0.02 abc | 236±5.4 a | |||||
| 16 | 25.0±1.22 b | 5.4±0.09 ab | 1.1±0.02 bc | 1.2±0.02 bc | 224±4.4 a | |||||
| 18 | 31.9±1.40 b | 5.2±0.09 ab | 0.9±0.02 de | 1.3±0.02 abc | 217±7.3 a | |||||
| 20 | 45.3±6.47 a | 4.8±0.17 ab | 0.8±0.02 e | 1.2±0.05 c | 217±8.2 a | |||||
| Significant | ||||||||||
| Short-day treatment (A) | ** | ** | ** | ** | ns | |||||
| Pinching timing (B) | ns | ns | ns | ns | ns | |||||
| A × B | ns | ns | ** | * | ** | |||||
생육과 개화특성간 상관분석 결과(Table 4), 생육 요인간에는 인위적인 적심처리에 의해 조절된 1차 지경을 제외하고 대부분의 요인에서 통계적으로 유의한 정상관관계가 성립되었다. 개화 관련 요인중에서는 총 화서수가 생육 요인과 유의한 정상관관계를 보여 분지수와 같이 생장량이 많은 처리구에서 화서수가 증가하는 경향을 보였다. 반면 화서장, 화서폭, 화경의 경우 생육 요인과 유의한 부상관관계를 나타내어 영양생장량이 많을수록 생식기관의 생장량이 감소하는 경향을 보였다. 한편 화서당 소화수는 요인간 통계적으로 유의한 상관관계가 인정되지 않았다.
Table 4
Pearson’s correlation coefficients among growth and flowering characteristics of Elsholtzia splendens at the flowering stage.
| Traitsz | PH | PW | MSD | NTB | NPB | NB | NS | SL | SW | PD |
| PW | 0.94** | |||||||||
| MSD | 0.93** | 0.93** | ||||||||
| NTB | 0.93** | 0.92** | 0.97** | |||||||
| NPB | 0.65* | 0.61* | 0.42ns | 0.44* | ||||||
| NB | 0.87** | 0.88** | 0.96** | 0.99** | 0.29ns | |||||
| NS | 0.87** | 0.88** | 0.96** | 0.98** | 0.33ns | 0.98** | ||||
| SL | -0.57* | -0.62* | -0.71** | -0.77** | -0.16ns | -0.79** | -0.81** | |||
| SW | -0.90** | -0.92** | -0.91** | -0.91** | -0.58** | -0.86** | -0.84** | 0.65** | ||
| PD | -0.76** | -0.77** | -0.79** | -0.83** | -0.52* | -0.79** | -0.81** | 0.83** | 0.79** | |
| NF | 0.25ns | 0.11ns | 0.07ns | 0.01ns | 0.17ns | -0.02ns | -0.06ns | 0.54* | 0.00ns | 0.33ns |
영양생장에서 생식생장으로의 전환은 현화식물에서 가장 중요한 발달 단계이며(Wang et al., 2020), 유한화서인 꽃향유는 생식 후 생장이 종료되는(Choi et al., 2024) 유한생장적(determinate growth) 특성을 나타낸다. 따라서 자연적인 단일조건에 감응한 적심 단독처리는 대조구와 유사한 생장 특성을 보였으며(Starman, 1991), 이는 생식생장으로의 전환이 충분히 유도되지 않은 상태에서는 적심 효과가 제한적으로 나타남을 의미한다. 반면 단일과 적심 복합처리에서는 꽃향유의 분명한 개화유도와 왜화(Fig. 3) 효과가 나타났다.
적심은 국화(Kahar, 2008), 개맨드라미(Lee et al., 2006), 절화용 겹도라지(Huh et al., 2015) 등 다양한 작물에서 생장억제 또는 개화 조절 등의 목적으로 사용되어 왔다. 이는 적심이 정아의 옥신 생성을 저해하여 정아우세를 억제함으로써 측지 발달을 촉진하고 왜화된 초형을 형성할 수 있기 때문으로 설명된다(Barbier et al., 2017). 특히 초장이 너무 길어 관상 가치를 저하시킬 경우에도 적심은 효과적인 생육 조절 수단으로 작용하며(Dole and Wilkins, 2005), 경우에 따라 화경장 등 생식기관의 생장을 촉진시키기도 한다(Oh et al., 2015). 추가적으로 많은 식물은 영양기관과 생식기관에 대한 자원 배분 사이에 부상관관계가 관찰되며, 이는 두 기관간 제한된 내재적 자원을 놓고 경쟁함을 의미한다(Abdusalam et al., 2012; Teitel et al., 2016).
도복 발생과 분화소재로서의 재배 가치 평가
포트 재배된 꽃향유의 도복은 식물체 전체가 쓰러져 개체끼리 얽히거나 쓰러지고(Fig. 4B), 상대적으로 길게 신장한 식물체 하단 지경이 지면에 접촉할 정도로 쳐진 형태(Fig. 4C)로 나타났다. 도복 정도를 조사한 결과(Fig. 4A), 대조구(22.2%)와 적심 단독처리구(평균 28.1%), 그리고 단일과 적심 복합처리구 중 적심시기가 14~20엽기(평균 36.1%)인 처리구에서 발생하였다. 반면 비교적 식물체의 왜화 정도가 컸던 단일과 2~12엽기 적심 복합처리구에서는 도복이 발생하지 않았다. 특히 도복이 발생하지 않은 처리구는 초장 50 ㎝ 이하, 초폭 30 ㎝ 이하, 총 분지수가 50개 이하라는 공통적인 생육특성을 보였는데, 이는 초장과 초폭, 분지수 등이 기계적 지지능력을 초과하여 도복 발생의 임계 요인으로 작용할 수 있음을 시사한다.
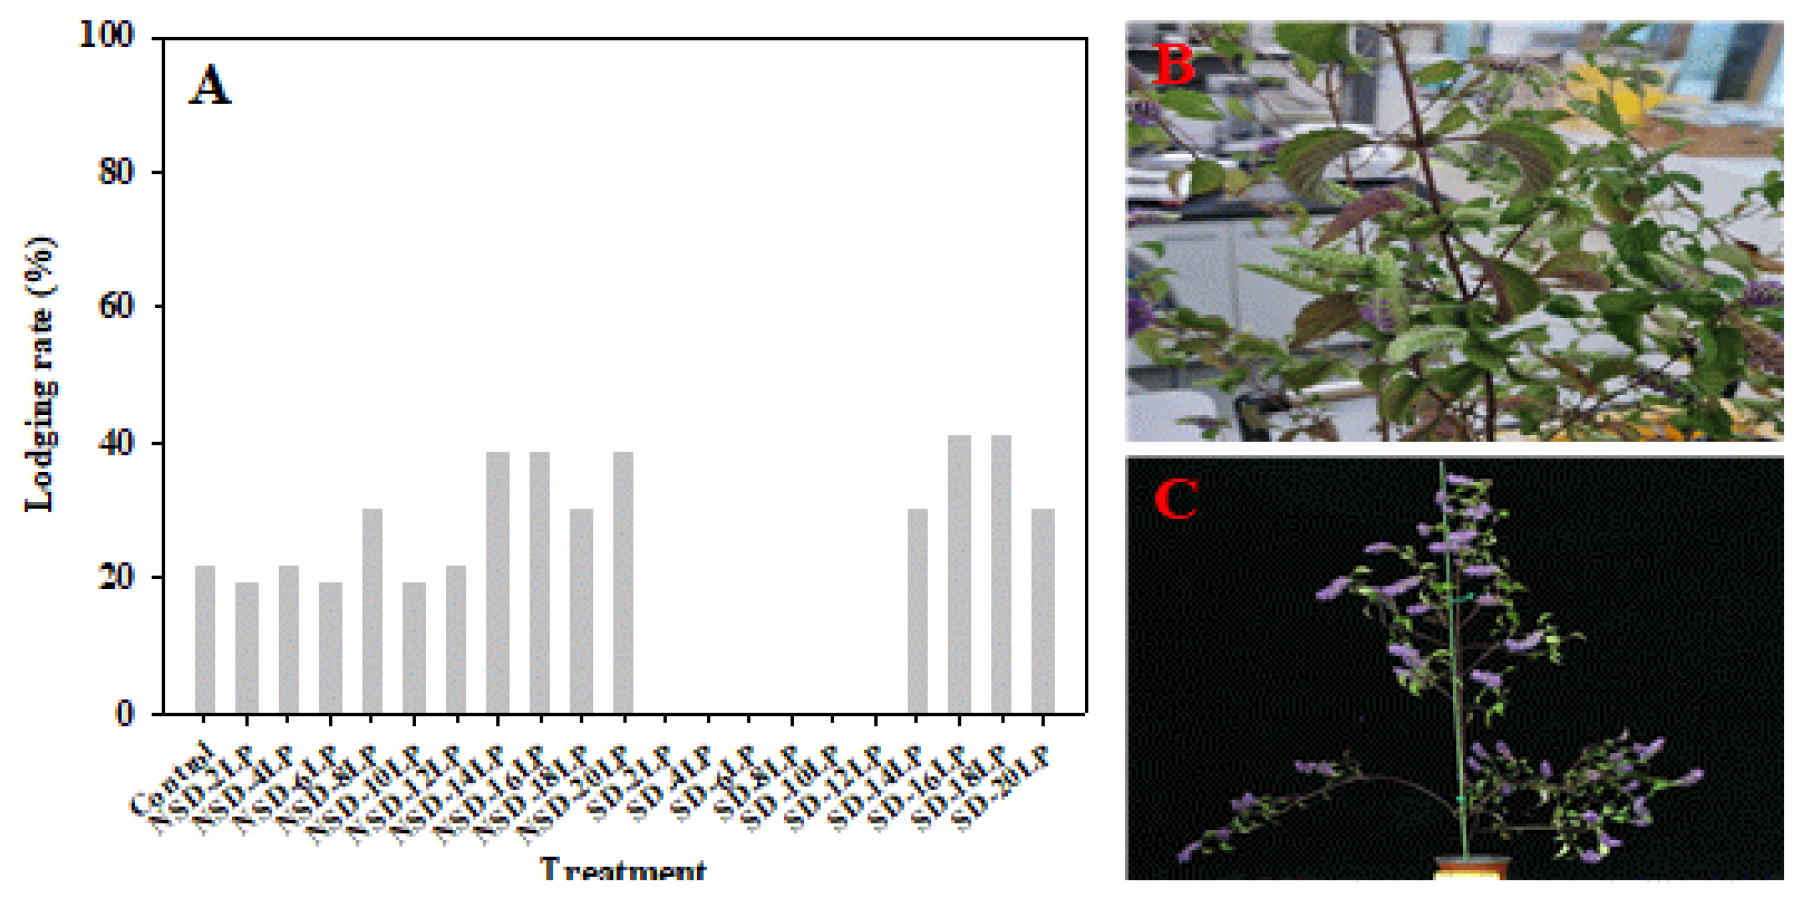
Fig. 4
Effects of short-day (16 h dark period) and pinching treatments on the lodging rate (A) of Elsholtzia splendens. B: plant entanglement resulting from vigorous vegetative growth. C: plants secured with supporting stakes to prevent lodging. NSD, SD, and LP on the x-axis of graph (A) denote no short-day treatment, short-day treatment, and leaf-stage pinching, respectively.
지금까지의 결과는 꽃향유의 단일처리(16시간의 암조건)가 분명한 개화유도 효과를 나타내며, 단일감응에 의해 생식생장으로의 전환이 병행되어야 적심시기에 따라 식물체의 왜화 효과를 극대화할 수 있음을 의미한다. 즉 단일과 적심처리가 꽃향유 분화재배의 핵심 조절인자로써 작용할 수 있음을 확인하였다. 세부적으로 대조구와 적심 단독처리구는 파종부터 개화까지 소요일수가 길었으며 도복 위험성이 높고, 양적인 생장에 의해 관상가치가 비교적 낮았다. 또한 단일과 적심 복합처리 중 14~20엽기 적심처리구 역시 대조구와 유사한 경향을 보였다. 반면 단일과 2~6엽기 적심처리구는 개화까지의 소요일수가 가장 짧았으나 생장량과 화서수가 적어 상대적으로 8엽 이상 적심처리구 보다 왜소한 초형을 나타내었다. 결과적으로 단일과 8~12엽기 적심처리(Fig. 3C1-C10)시 파종일부터 화서출현기와 개화기까지 각각 89~100일, 104~122일 소요되었으며, 도복이 발생하지 않았고, 다른 처리구에 비해 생장(평균 초장 38.6 ㎝, 초폭 23.2 ㎝, 총 분지수 33.2개)과 개화특성(평균 총 화서수 11.1개)이 균형을 이루어 관상가치가 가장 양호한 것으로 판단되었다.
본 실험은 꽃향유의 영양생장에서 생식생장으로의 전환 유도와 적심을 통해 식물체의 개화와 생장을 조절하고자 하였다. 특히 단일식물로 알려진 꽃향유의 분화재배를 위해 단일처리와 적심을 복합적으로 적용하여 개화와 왜화를 동시에 유도할 수 있는 가능성을 제시하고자 하였다. 결과적으로 본 연구는 국내 자생자원인 꽃향유의 단일처리와 적심 시기의 최적 조합을 제시하고, 상업적 재배기술 확립을 위한 기초자료를 제공함으로써 학술적·산업적 의의가 클 것으로 기대된다. 추가적으로 화훼작물에서 유사한 효과를 나타내는 것으로 알려진 생장억제제 처리(Kahar, 2008)를 병행한 후속 연구가 수행된다면, 보다 정밀한 생육 및 개화조절 기술의 확립이 가능할 것으로 판단된다.
적 요
본 연구는 꽃향유(Elsholtzia splendens)의 생장 및 개화 특성에 미치는 단일처리와 적심 시기의 영향을 구명하여 상업적 분화 생산 기술을 확립하고자 수행하였다. 처리구는 적심 단독처리와 단일(16시간 암처리, 8시간 일장) 및 적심 복합처리로 구성하였으며, 적심은 2엽기부터 20엽기까지 2엽 간격으로 실시하였다. 적심 단독처리는 대조구와 비교하여 생육 및 개화에 유의한 영향을 미치지 않았다. 반면, 단일과 적심의 복합처리는 화서출현기와 개화기를 각각 28–90일 및 35–98일 단축하였으며, 단일처리 개시 후 평균 20.4일에 화서출현, 39.7일에 개화하였다. 또한 복합처리는 영양생장을 억제하여 초장, 초폭, 주경의 굵기 및 총 분지수를 각각 대조구의 61.9%, 65.5%, 60.8%, 32.5% 수준으로 감소시켰다. 상관분석 결과, 총 화서수는 영양생장과 정의 상관관계를 보인 반면, 화서의 크기는 영양생장과 부의 상관을 보여 영양생장과 생식생장 간 상충관계를 나타냈다. 도복은 초장 50 ㎝ 이상, 초폭 30 ㎝ 이상, 총 분지수 50개를 초과한 처리구에서 발생하였으나, 단일과 2–12엽기 적심 복합처리에서는 발생하지 않았다. 종합하면, 단일처리와 8–12엽기 적심의 복합처리는 개화 촉진, 왜화 및 도복 억제를 통해 양호한 관상 품질을 확보할 수 있어 꽃향유의 상업적 분화 생산에 효과적인 재배기술로 판단된다.