

서 언
재료 및 방법
식물 재료 및 종자 준비
종자 형태적 특성 및 활력
종자의 기본 발아 특성 평가를 위한 발아검정
종피 파상 처리에 따른 수분 흡수
GA3 침지 처리에 따른 유묘 출현 특성
종피 파상 처리에 따른 유묘 출현 특성
발아 및 출현 지표
통계 분석
결 과
종자 및 발아 특성
무처리 및 파상 처리 종자의 수분 흡수
GA3 침지 처리에 따른 유묘 출현 특성
종피 처리에 따른 유묘 출현 특성
고 찰
적 요
서 언
하늘타리(Trichosanthes kirilowii Maxim.)는 박과(Cucurbitaceae)에 속하는 다년생 초본성 덩굴식물로, 주로 동아시아에 분포하며 뿌리와 종자는 전통적으로 약용 소재로 이용되어 왔다(Park et al., 2021). 약용식물 자원을 안정적으로 생산하기 위해서는 종의 특성에 적합한 증식 기술이 뒷받침되어야 하므로 하늘타리의 효율적인 육묘 체계를 확립하는 것이 중요하다. 하늘타리에 관한 선행연구에서는 기내 증식 및 식물체 재분화 체계(Joo et al., 2019; Zhao et al., 2018), 저장 및 전처리 조건에 따른 종자 발아 반응(Lee et al., 2014) 등이 검토되었다. 그러나 기존 연구는 주로 발아 반응을 중심으로 수행되었으며, 실제 육묘에 이용되는 상토 조건에서의 유묘 출현 특성, 특히 출현 시기와 시간적 균일성에 관한 연구는 제한적이다. 빠르고 균일한 유묘 출현은 효율적인 육묘 생산을 위한 핵심 요소라는 점에서 이러한 연구의 부족은 실용적 측면에서 중요한 공백에 해당한다(Finch-Savage and Bassel, 2016).
종자의 발아와 이후의 유묘 출현은 배의 생장 잠재력과 종자 피복 조직이 가하는 제약 사이의 균형에 의해 영향을 받는다(Steinbrecher and Leubner-Metzger, 2017). 또한 종피의 특성은 발아 전 수분 흡수를 조절하여 수분의 유입 여부뿐만 아니라 초기 흡수 속도와 양상에도 영향을 줄 수 있다(Debeaujon et al., 2007; Upretee et al., 2024). 선행 형태학적 연구에서 하늘타리 종자는 장타원형에서 장타원상 난형으로 보고되었다(Park et al., 2021). 종피의 두께와 구조적 특성은 수분의 유입 속도와 종자 피복 조직의 기계적 저항에 영향을 주어 발아 및 출현 시기를 조절할 수 있다(Nakabayashi and Leubner-Metzger, 2021; Upretee et al., 2024). 종자 형질과 발아 특성 간의 유사한 관련성은 다른 박과 식물에서도 보고되었다. 예를 들어, Citrullus colocynthis에서는 채종시기에 따라 종자 크기와 종피 두께가 달랐으며, 이들 형질은 광조건에서의 최종 발아율과 부의 상관관계를 보였다(El-Keblawy et al., 2017). 따라서 하늘타리 종자의 출현 양상을 이해하기 위해서는 종피가 초기 수분 흡수와 유묘 출현 시기에 미치는 영향을 평가할 필요가 있다.
파종 전 처리는 종자의 발아 및 유묘 출현에 영향을 미치는 다양한 요인을 조절할 수 있다. 지베렐린(GA3)은 ABA 신호전달, 종피의 특성 및 배의 생장 잠재력과의 상호작용을 통해 종자 발아에 관여하므로 외생 GA3 처리에 대한 하늘타리 종자의 출현 반응을 평가할 필요가 있다(Debeaujon and Koornneef, 2000; Vishal and Kumar, 2018). 또한 부분 파상 처리나 종피 제거와 같은 종피 변형은 초기 수분 흡수와 유묘 출현 시기에 영향을 줄 수 있다(Carruggio et al., 2020; Rocha et al., 2022). 그러나 하늘타리에서 GA3 침지와 종피 변형이 유묘 출현 특성에 미치는 영향은 체계적으로 비교되지 않았다.
본 연구는 GA3 침지와 종피 처리에 대한 하늘타리 종자의 출현 반응을 각각 평가하고, 그 결과를 바탕으로 유묘 출현 지연과 관련된 요인을 검토하기 위해 수행하였다. 구체적으로 연구에 사용된 종자 로트의 기본적인 종자 활력과 발아능을 확인하고, 무처리 종자와 부분 파상 처리 종자의 초기 수분 흡수를 비교하였다. 또한 GA3 침지 처리가 최종 출현율, 출현 시기 및 출현시간의 변이에 미치는 영향을 평가하고, 부분 파상 처리와 종피 제거가 유묘 출현 특성에 미치는 영향을 조사하였다. 최종 출현율과 출현 시기 관련 지표를 구분하여 평가함으로써 하늘타리 종자의 출현 지연과 관련된 요인을 해석하고 신속하고 균일한 유묘 생산에 활용할 수 있는 처리 후보를 검토하고자 하였다.
재료 및 방법
식물 재료 및 종자 준비
하늘타리(Trichosanthes kirilowii Maxim.)의 완숙 과실은 2025년 10월 20일 대한민국 충청북도 음성군에 위치한 국립원예특작과학원 시험포장에서 수확하였다. 수확한 과실에서 종자를 분리하여 정선한 후, 20℃의 실험실 조건에서 3일간 풍건하였다. 종자 로트 간 변이를 최소화하기 위해 모든 실험에는 동일한 단일 종자 로트(single seed lot)를 사용하였다. 건조한 종자는 밀봉한 비닐봉지에 넣은 뒤 실리카겔과 함께 플라스틱 용기에 보관하였으며, 정선 및 건조 완료 후 1개월 이내에 실험에 사용되었다.
종자 형태적 특성 및 활력
본 연구에 사용한 종자 로트의 형태적 특성과 종자 활력(viability)을 평가하였다. 무작위로 선발한 종자 20립의 길이와 너비를 디지털 캘리퍼스로 측정하였으며, 측정값은 평균±표준오차(SE)로 나타냈다. 천립중은 1,000립씩 4반복으로 측정하여 g 단위로 나타냈다.
종자 활력은 테트라졸륨(tetrazolium, TZ) 검정을 이용하여 평가하였다. 종자 간 균일한 수분 흡수와 이후 TTC 용액의 침투를 유도하기 위해 종자 25립의 종피를 완전히 제거한 후, 실온의 증류수에서 24시간 동안 침지시켰다. 수분 흡수 후 종자를 1% (w/v) 2,3,5-triphenyl tetrazolium chloride (TTC) 용액에 침지하여 30℃ 암조건에서 48시간 동안 반응시켰다. 반응이 완료된 종자는 면도날로 반으로 절단한 후 내부 조직의 염색 양상을 육안으로 관찰하였다. 내부 종자 조직 전체에서 균일한 적색 포마잔 반응을 나타낸 종자를 생존 가능한 종자로 판정하였다. 종자 활력은 검정에 사용한 종자 25립 중 생존 가능한 종자가 차지하는 백분율로 나타냈다.
종자의 기본 발아 특성 평가를 위한 발아검정
공시 종자 로트의 기본적인 발아 특성을 확인하기 위해 발아검정을 수행하였다. 각 반복에서는 증류수 8 mL로 적신 3겹의 여과지를 깐 플라스틱 발아용기에 종자를 치상하였다. 발아시험은 25℃로 설정된 환경조절챔버에서 30일간 수행하였으며, 광조건은 연속광, 광량은 약 30 µmol·m-2·s-1 PPFD로 유지하였다. 시험 기간에는 여과지가 마르지 않도록 필요에 따라 증류수를 보충하였다. 발아 여부는 매일 조사하였으며, 유근이 종피 밖으로 1 ㎜ 이상 돌출한 종자를 발아한 것으로 판정하였다. 발아검정은 반복당 종자 25립씩 4반복으로 수행하여 총 100립으로 수행하였으며, 매일 새롭게 발아한 종자 수를 기록하여 발아 지수를 계산하였다.
종피 파상 처리에 따른 수분 흡수
종피가 초기 수분 흡수를 제한하는지를 평가하기 위해 무처리 종자와 부분 파상 처리 종자의 수분 흡수율을 비교하였다. 부분 파상 처리는 자엽이 노출되지 않도록 손톱깎이를 이용하여 종자 측면의 종피 일부를 작게 절단하는 방식으로 수행하였다. 종피를 완전히 제거하면 자엽이 직접 노출되어 종자의 구조적 상태가 달라지므로 종피 제거 종자는 종피에 의해 조절되는 수분 흡수를 평가하는 본 실험에서 무처리 종자 및 부분 파상 처리 종자와 비교하기에 적합하지 않아 제외하였다.
수분 흡수 처리 직전에 각 반복에 사용된 종자 15립의 총무게를 측정하여 초기 생체중을 구하였다. 이후 종자 15립을 튜브에 넣고 실온의 증류수에 침지하였다. 침지 후 24시간 간격으로 각 튜브의 종자를 꺼내 흡수지로 표면의 수분을 가볍게 제거한 후 종자 15립의 총무게를 측정하고, 다시 동일한 튜브에 넣었다. 수분 흡수율은 다음 식을 이용하여 초기 종자 무게에 대한 생체중 증가율로 나타냈다.
여기서 W0는 수분 흡수 전 종자의 초기 생체중이며, Wt는 침지 후 t 시점에서 측정한 생체중이다. 각 처리는 튜브당 종자 15립을 하나의 실험단위로 하여 4반복으로 수행하였다.
GA3 침지 처리에 따른 유묘 출현 특성
GA3 침지 처리에 따른 하늘타리 종자의 유묘 출현 특성을 평가하기 위해 무침지 대조구, 증류수(DW) 침지 대조구 및 100, 200, 500 ㎎·L-1 GA3 처리구 등 총 5개 처리를 설정하였다. GA3는 1 mL 이하의 ethanol에 용해하여 1,000 ㎎·L-1 stock solution 500 mL를 제조한 후 증류수로 희석하여 각 처리농도를 조제하였다. 이에 따라 최종 처리용액의 ethanol 농도는 100, 200 및 500 ㎎·L-1 GA3 처리구에서 각각 0.02, 0.04 및 0.10% (v/v) 이하였으며, DW 침지 대조구에는 ethanol을 첨가하지 않았다. 무침지 대조구의 종자는 별도의 침지 과정 없이 바로 파종하였으며, 증류수 및 GA3 처리구의 종자는 각각의 용액에 25℃ 암조건에서 72시간 동안 침지하였다. 침지 시간은 앞서 수행한 수분 흡수 실험 결과를 바탕으로, 종자가 충분히 수분을 흡수할 수 있도록 72시간으로 설정하였다.
침지가 끝난 종자는 증류수로 충분히 세척하고 표면의 수분을 제거한 후, 상업용 원예 상토를 충전한 105구 플러그 트레이에 파종하였다. 각 처리는 종자 20립씩 4반복으로 수행하였다. 파종한 트레이는 25℃로 설정된 환경제어형 재배시설에서 관리하였으며, 광주기는 16/8시간(명/암), 광량은 약 50 µmol·m-2·s-1로 유지하였다. 관수는 상부관수 방식으로 하루 1회 실시하였다. 배축이 상토 표면 위로 출현한 경우를 유묘 출현으로 판정하였으며, 파종 후 30일 동안 매일 조사하였다.
종피 파상 처리에 따른 유묘 출현 특성
종피 처리에 따른 하늘타리 종자의 유묘 출현 특성을 평가하기 위해 무처리, 부분 파상 처리 및 종피 제거 처리 등 총 3개 처리구를 설정하였다(Fig. 1A–C). 무처리 종자는 대조구로 사용하였으며, 종피에 별도의 처리 없이 파종하였다. 부분 파상 처리는 Fig. 1B에 제시한 바와 같이 손톱깎이를 이용하여 종자 측면의 종피 일부를 자엽이 노출되지 않을 정도로 절단하는 방식으로 수행하였다. 종피 제거 처리구는 파종 전에 종피 전체를 제거하였다.
종자는 종피 처리 후 별도의 침지 과정 없이 바로 파종하였다. 상업용 원예 상토를 충전한 105구 플러그 트레이의 각 셀에 종자를 1립씩 파종한 후 동일한 상토로 복토하였다. 각 처리는 종자 20립씩 4반복으로 수행하였다. 파종한 트레이는 상기 언급된 조건과 동일한 환경제어형 재배시설에서 관리하였다. 배축이 상토 표면 위로 출현한 경우를 유묘 출현으로 판정하였으며, 파종 후 30일 동안 매일 조사하였다.
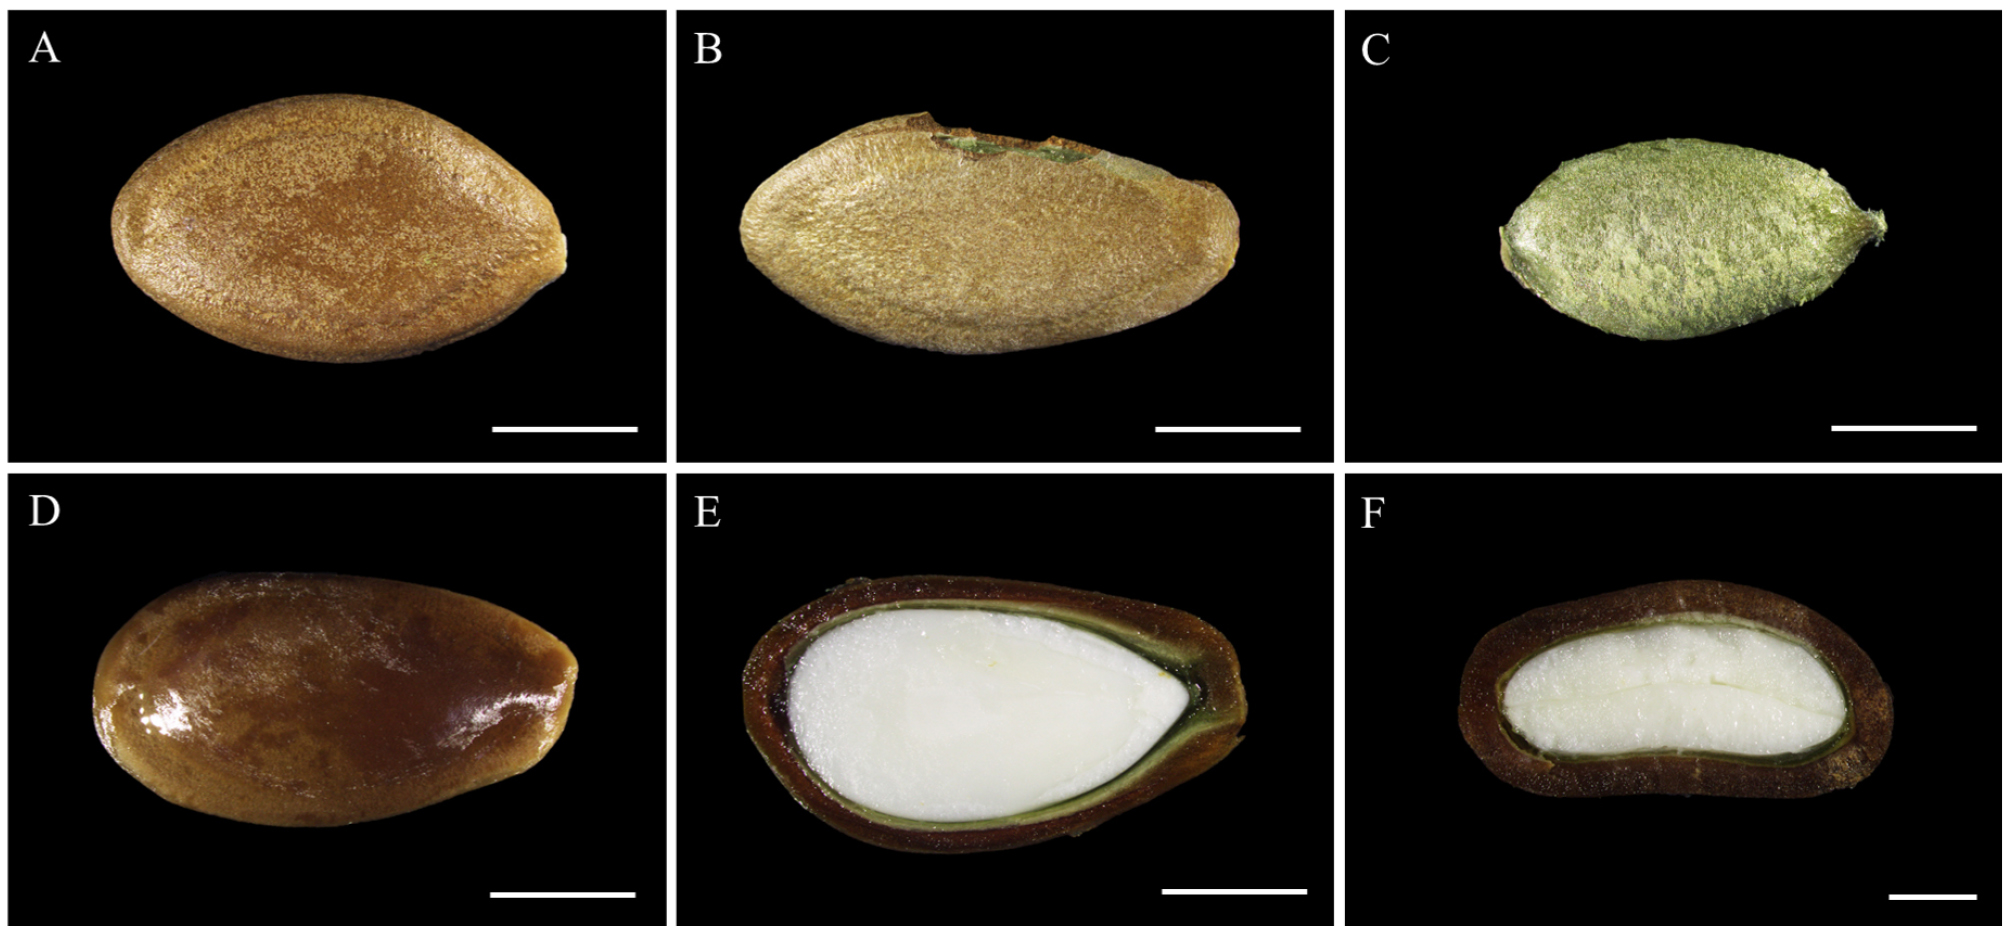
Fig. 1
Seed morphology and internal structure of Trichosanthes kirilowii. (A) Intact (untreated) seed, (B) partially scarified seed, (C) decoated seed, and (D) water-imbibed intact seed; (E) longitudinal and (F) transverse sections showing two large cotyledons and no visible endosperm. Scale bars = 5 ㎜ in A–E and 2 ㎜ in F.
발아 및 출현 지표
발아 및 출현 지표는 일별 조사 수치를 바탕으로 Ranal and Santana (2006)의 방법에 따라 계산하였다. 실험실 내 발아검정에서는 최종 발아율(G%), 발아개시일, 최종 발아수의 50%에 도달하는 시간(T50), 평균발아일수(MGT) 및 발아시간 변이계수(CVt)를 산출하였다. 상토 기반 출현 실험에서 최종 출현율(EP)은 사전에 설정한 30일 관찰기간 종료시점의 누적 출현율로 정의하였다. E50은 각 반복에서 30일 관찰기간 동안 기록된 누적 출현수의 50%에 도달한 시점으로 정의하였다. MET와 CVt 역시 30일 관찰기간 동안 기록된 출현 자료를 이용하여 계산하였다.
T50와 E50는 각 반복의 최종 발아수 또는 최종 출현수의 50%에 도달하는 시점으로 정의하고, 이를 전후하는 두 조사일 사이에서 선형보간법으로 추정하였다(Farooq et al., 2005). MGT와 MET는 조사일별 신규 발아수 또는 신규 출현수를 가중치로 적용한 평균 시간으로 계산하였다. CVt는 발아 또는 출현 시점의 표본표준편차를 MGT 또는 MET로 나누어 백분율로 나타냈다. 표본표준편차 계산에는 자유도 보정을 적용하여 분모를 총 발아수 또는 출현수에서 1을 뺀 값으로 설정하였다. 발아와 유묘 출현은 서로 다른 발달 단계를 나타내므로 발아 지표와 출현 지표를 구분하여 제시하였다.
통계 분석
자료는 평균 ± 표준오차(mean ± SE)로 나타냈다. GA3 침지 및 종피 처리 실험의 출현 지표는 one-way ANOVA를 이용하여 분석하였으며, 처리 효과가 유의한 경우 Tukey’s HSD test를 실시하였다. 수분 흡수 실험에서는 처리(treatment), 침지시간(time; 1–7 d) 및 treatment × time 상호작용을 포함한 repeated-measures ANOVA로 분석하였다. 구형성 가정이 충족되지 않은 경우 Greenhouse–Geisser 보정을 적용하였으며, 상호작용이 유의한 경우 각 측정시점의 처리 간 비교에는 Welch’s t-test와 Holm 다중비교 보정을 적용하였다. Day 0은 수분 흡수율이 계산상 0%로 정의되는 기준시점이므로 분석에서 제외하였다. 모든 통계분석은 SAS 9.4 (SAS Institute Inc., Cary, NC, USA)를 이용하였으며, 통계적 유의수준은 P < 0.05로 설정하였다.
결 과
종자 및 발아 특성
본 연구에 사용한 하늘타리 종자는 편평한 난형이었으며, 육안 관찰에서 종피는 단단한 외관을 보였다(Fig. 1A). 종피 내부에는 발달된 2개의 자엽이 종자 내부의 대부분을 차지하고 있었으며, 육안으로 확인되는 배유는 관찰되지 않았다(Fig. 1E–F). 천립중은 169.8 g이었고, 종자의 길이와 너비는 각각 15.48 ㎜와 9.14 ㎜였다(Table 1). Tetrazolium 검정에 따른 종자 활력은 84%였다.
Table 1
Seed characteristics, viability, and laboratory germination performance of Trichosanthes kirilowii.
25℃ 광조건에서 30일간 조사한 결과, 최종 발아율은 86.0%였다. 평균 발아개시일은 파종 후 8.75일이었으며, T50은 11.32일이었다. MGT는 11.90일이었고, CVt는 15.53%로 조사되었다.
무처리 및 파상 처리 종자의 수분 흡수
초기 종자 무게에 대한 생체중 증가율로 나타낸 수분 흡수율은 처리와 침지시간 간에 유의한 상호작용을 나타냈다(P < 0.001; Fig. 2). 침지 1일 후 수분 흡수율은 부분 파상 처리 종자에서 65.1 ± 1.35%로 무처리 종자의 29.5 ± 3.06%보다 유의하게 높았다(adjusted P = 0.003). 침지 2일 후에도 부분 파상 처리 종자의 수분 흡수율은 69.0 ± 1.37%로 무처리 종자의 41.5 ± 3.80%보다 유의하게 높았다(adjusted P = 0.018). 그러나 침지 3일 이후에는 각 측정 시점에서 두 처리 간 유의한 차이가 나타나지 않았다.
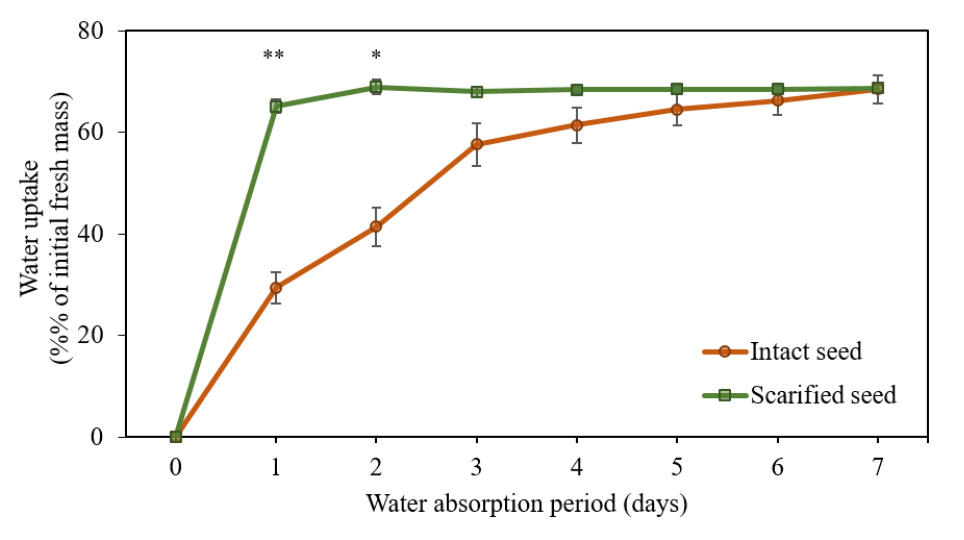
Fig. 2
Water uptake during imbibition in intact and partially scarified Trichosanthes kirilowii seeds. Water uptake was expressed as the percentage increase in fresh mass relative to the initial seed mass. Values are means ± SE (n = 4 replicate tubes, 15 seeds per tube). Data from 1–7 d were analyzed using repeated-measures ANOVA with treatment as the between- subject factor and time as the within-subject factor. Following a significant treatment × time interaction, differences between treatments at each time point were evaluated using Welch’s t-test with Holm adjustment for multiple comparisons. Asterisks indicate significant differences between treatments (*< 0.05; ** < 0.01).
GA3 침지 처리에 따른 유묘 출현 특성
처리별 누적 출현 양상과 출현 지표는 각각 Fig. 3과 Table 2에 제시하였다. 30일 관찰기간 종료시점의 최종 출현율은 GA3 농도가 높아질수록 낮아져 무침지 대조구의 80.0 ± 2.04%에서 GA3 500 ㎎·L-1 처리구의 68.8 ± 2.39% 범위를 보였으나 처리 간 유의적인 차이는 없었다(P = 0.376). E50 (P = 0.842)와 MET (P = 0.558)에서도 처리 간 유의한 차이가 나타나지 않았다.
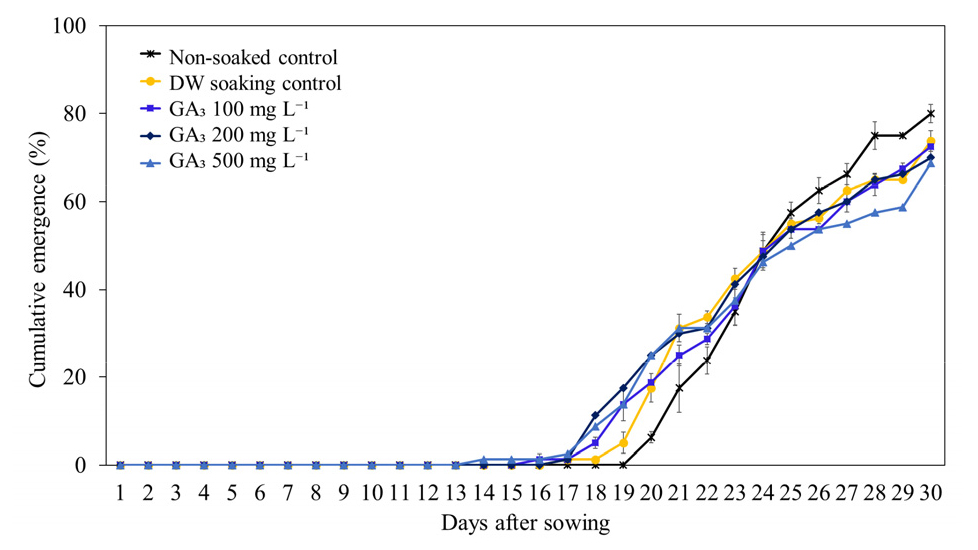
Table 2
Effects of GA3 pre-soaking on seedling emergence indices of Trichosanthes kirilowii.
| Treatment | EP (%)z | First emergence (d) | E50 (d) | MET (d) | CVt (%) |
| Non-soaked control | 80.0 ± 2.04 | 20.0 ± 0.00 a | 23.2 ± 0.61 | 24.2 ± 0.42 | 11.4 ± 0.97 b |
| DW soaking control | 73.8 ± 5.91 | 18.8 ± 0.63 ab | 22.2 ± 0.68 | 23.4 ± 0.52 | 14.8 ± 0.46 ab |
| GA3 100 ㎎·L-1 | 72.5 ± 2.50 | 17.8 ± 0.63 ab | 22.7 ± 0.34 | 23.4 ± 0.53 | 15.1 ± 2.03 ab |
| GA3 200 ㎎·L-1 | 70.0 ± 5.77 | 17.8 ± 0.25 ab | 22.3 ± 0.75 | 22.8 ± 0.56 | 15.7 ± 1.30 ab |
| GA3 500 ㎎·L-1 | 68.8 ± 2.39 | 16.8 ± 0.95 b | 22.5 ± 0.84 | 23.1 ± 0.84 | 17.5 ± 0.40 a |
| P-valuey | 0.376 | 0.016 | 0.842 | 0.558 | 0.036 |
출현개시일은 처리 간 유의한 차이를 보였으며(P = 0.016), GA3 500 ㎎·L-1 처리구가 16.8 ± 0.95일로 무침지 대조구의 20.0 ± 0.00일보다 유의하게 빨랐으나 동일하게 72시간 침지한 DW 침지 대조구와는 유의한 차이가 없었다.
CVt는 GA3 농도가 높아질수록 수치상 증가하였으며, 처리 간 유의한 차이가 관찰되었다(P = 0.036). GA3 500 ㎎·L-1 처리구의 CVt는 17.5 ± 0.40%로 무침지 대조구의 11.4 ± 0.97%보다 유의하게 높았으나 DW 대조구와는 유의한 차이가 없었다. 종합하면 GA3 침지 처리에 따른 차이는 최종 출현율, E50 및 MET에서는 나타나지 않았으며, 출현개시일과 CVt에서만 확인되었다.
종피 처리에 따른 유묘 출현 특성
종피 처리에 따른 누적 출현 양상과 출현 지표는 각각 Fig. 4와 Table 3에 제시하였다. 최종 출현율은 무처리 종자 76.3 ± 3.77%, 부분 파상 처리 종자 82.5 ± 4.33%, 종피 제거 종자 80.0 ± 2.04%로 처리 간 유의한 차이가 없었다(P = 0.478). 반면 출현개시일, E50 및 MET는 모두 처리 간 유의한 차이를 보였다(P < 0.001).
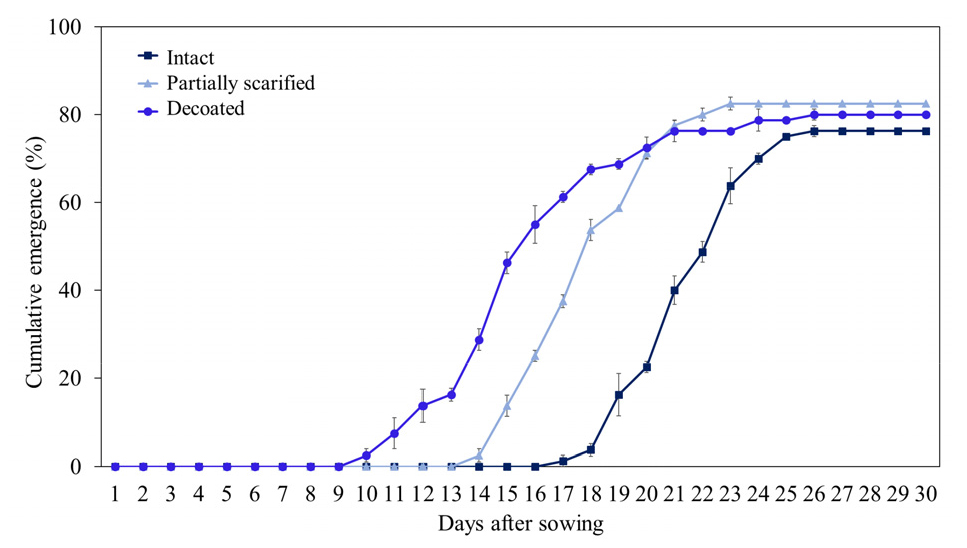
Table 3
Effects of seed coat modification on seedling emergence indices of Trichosanthes kirilowii.
| Treatment | EP (%)z | First emergence (d) | E50 (d) | MET (d) | CVt (%) |
| Intact | 76.3 ± 3.77 | 18.0 ± 0.41 a | 20.9 ± 0.32 a | 21.5 ± 0.24 a | 9.5 ± 0.91 b |
| Partially scarified | 82.5 ± 4.33 | 14.5 ± 0.29 b | 17.2 ± 0.21 b | 17.9 ± 0.27 b | 12.5 ± 0.47 b |
| Decoated | 80.0 ± 2.04 | 10.8 ± 0.48 c | 14.6 ± 0.14 c | 15.7 ± 0.19 c | 21.5 ± 1.71 a |
| P-valuey | 0.478 | <0.001 | <0.001 | <0.001 | <0.001 |
출현개시일은 종피 제거 종자에서 10.8 ± 0.48일로 가장 빨랐으며, 부분 파상 처리 종자 14.5 ± 0.29일, 무처리 종자 18.0 ± 0.41일 순이었다. E50도 무처리 종자의 20.9 ± 0.32일에서 부분 파상 처리 종자 17.2 ± 0.21일과 종피 제거 종자 14.6 ± 0.14일로 단축되었다. MET 또한 무처리 종자 21.5 ± 0.24일, 부분 파상 처리 종자 17.9 ± 0.27일, 종피 제거 종자 15.7 ± 0.19일 순으로 단축되었다.
CVt도 처리 간 유의한 차이를 보였다(P < 0.001). 무처리 종자와 부분 파상 처리 종자의 CVt는 각각 9.5 ± 0.91와 12.5 ± 0.47%로 두 처리 간에는 유의한 차이가 없었으나 종피 제거 종자의 21.5 ± 1.71%보다는 모두 유의하게 낮았다. 종합하면 부분 파상 처리와 종피 제거는 최종 출현율에는 유의한 영향을 미치지 않으면서 하늘타리 유묘의 출현 시기를 단축하였다.
고 찰
본 연구에서 하늘타리 종자는 GA3 침지 처리와 종피 처리에 서로 다른 반응을 나타냈다. GA3 침지 처리는 최종 출현율, E50 및 MET와 같은 주요 출현 지표를 유의하게 개선하지 못했으며, 최고 농도 처리에서 출현개시일과 CVt에만 유의한 변화가 나타났다. 반면 종피 처리는 최종 출현율보다 출현 시기 관련 지표에 주로 영향을 미쳐 유묘 출현을 뚜렷하게 앞당겼다. 이러한 결과는 본 실험 조건에서 하늘타리 종자의 출현 지연에 종피와 관련된 요인이 중요하게 관여했음을 시사한다. 이는 종피의 특성이 수분 흡수와 발아 양상을 조절하는 데 관여한다는 기존 연구와도 부합한다(Baskin et al., 2000; Upretee et al., 2024).
TZ 검정에서 종자 활력은 84%였으며, 25℃ 연속광 조건에서의 발아율은 86.0%로 나타났다. 두 값이 유사했다는 점은 적절한 수분과 환경조건이 제공되었을 때 생존 가능한 종자 대부분이 유근 돌출에 이르는 발아 과정을 완료할 수 있었음을 시사한다(Baskin and Baskin, 2014; Bewley, 1997). 따라서 상토 조건에서 관찰된 출현 지연은 낮은 종자 활력이나 종자 자체의 발아능 부족이 원인은 아닌 것으로 판단된다.
이러한 결과를 종자 휴면의 관점에서 보면 종자 휴면은 일반적으로 생리적 휴면, 형태적 휴면, 형태생리적 휴면, 물리적 휴면 및 복합휴면으로 구분된다(Baskin and Baskin, 2004). 본 연구의 하늘타리 종자는 무처리 상태에서도 수분을 흡수하였고 발달된 배가 관찰되었으며, 25℃ 조건에서 높은 발아율을 나타내었으므로 전형적인 물리적 또는 형태적 휴면으로 보기 어렵다. 따라서 본 연구에 사용한 종자 로트는 강한 휴면 상태라기보다 종피 관련 요인에 의해 발아 및 출현 시기가 지연되는 특성을 보인 것으로 판단된다.
종자 수분흡수에서, 침지 3일 이후에는 무처리 종자와 부분 파상 처리 종자 간 수분 흡수율에 유의한 차이가 없었으나 침지 초기 1–2일 동안 무처리 종자의 수분 흡수는 상대적으로 느렸다. 종피는 수분의 유입을 완전히 차단하는 장벽으로만 작용하는 것이 아니라 수분이 종자 내부 조직에 도달하는 속도와 경로를 조절할 수 있다(Koizumi et al., 2008). 따라서 본 연구의 결과는 하늘타리 종피가 수분 유입을 완전히 억제하기보다 초기 수분 흡수를 지연시키는 역할을 했을 가능성을 시사한다. 이와 유사하게 박과 식물인 여주(Momordica charantia)에서도 두껍고 단단한 종피가 점진적인 수분 흡수와 발아 또는 유묘 출현의 지연에 관여하는 것으로 보고되었다(Adhikari et al., 2021; Byregowda et al., 2025). 이러한 결과를 종합하면, 하늘타리 무처리 종자에서 관찰된 초기 수분 흡수 지연은 상토 조건에서 출현 시기가 늦어지는 것과 관련되었을 것으로 추측된다.
GA3는 ABA 신호전달, 배의 생장 잠재력 및 유근의 돌출을 제한하는 조직의 약화에 관여하는 발아 조절물질로 알려져 있다(Debeaujon and Koornneef, 2000; Sahu et al., 2025; Yamaguchi, 2008). 따라서 외생 GA3가 하늘타리 종자의 출현 특성에 미치는 영향을 평가하기 위해 GA3 침지 처리를 적용하였다. 그러나 본 실험 조건에서 GA3 침지는 30일 관찰기간의 출현율, E50 및 MET를 개선하지 못하였다. GA3 500 ㎎·L-1 처리구는 무침지 대조구보다 출현개시일이 빠르고 CVt가 높았으나 두 지표 모두 동일하게 72시간 침지한 DW 대조구와는 유의한 차이가 없었다. 따라서 이러한 차이를 GA3 자체의 효과로 명확히 구분하기는 어렵다. 또한 GA3 처리액 조제에는 소량의 ethanol이 사용된 반면 DW 침지 대조구에는 ethanol이 포함되지 않았으므로 vehicle 조건이 완전히 동일하지 않았다는 점도 GA3 처리 효과의 해석에서 고려할 필요가 있다. 시험한 농도 범위에서 출현율, E50 및 MET의 농도 의존적인 개선도 나타나지 않았으므로 더 높은 농도의 GA3가 출현을 향상시킬 것이라고 예측하기는 어렵다. 이러한 결과와 앞서 확인된 초기 수분 흡수 및 종피 처리 반응을 종합하면 본 실험 조건에서 종피와 관련된 요인이 하늘타리의 출현 지연에 중요하게 관여했음을 뒷받침한다.
종피에 의한 제약은 종피 파상 처리 실험에서 가장 뚜렷하게 나타났다. 종자의 발아와 이후 유묘 출현이 이루어지기 위해서는 배의 생장력이 종자 피복 조직이 가하는 저항을 극복해야 하며(Steinbrecher and Leubner-Metzger, 2017), 종피와 과피의 물리화학적 특성은 수분 투과성과 기계적 저항을 통해 발아 과정에 영향을 줄 수 있다(Nakabayashi and Leubner- Metzger, 2021). 본 연구에서는 30일 관찰기간 내 무처리 종자에서도 대부분의 종자가 출현하였으며, 이는 하늘타리 종피가 발아와 출현을 완전히 차단하는 절대적 장벽으로 작용하지는 않았음을 시사한다. 종피 처리에 따른 효과는 최종 출현율의 증가보다 출현 시기의 단축에서 주로 확인되었다. 출현개시일, E50 및 MET는 무처리, 부분 파상 처리, 종피 제거 순으로 단계적으로 단축되었으며, 이러한 결과는 종피의 물리적 상태를 변화시키는 것이 초기 유묘 출현을 지연시키는 종피 관련 제약을 완화했을 가능성이 높다. 다른 식물에서도 기계적 파상 처리는 종피에 의한 제약을 완화하여 발아 또는 출현을 촉진하는 방법으로 이용되어 왔다(Rocha et al., 2022). 이와 유사하게 대추 종자에서도 부분 및 완전 파상 처리가 무처리에 비해 발아를 촉진하는 것으로 보고되었다(Oh et al., 2025). 종피 제거는 출현을 가장 빠르게 앞당겼지만 CVt도 유의하게 높았던 반면, 부분 파상 처리는 CVt의 유의한 증가 없이 출현 시기를 단축하였다. 이는 종피 처리의 정도에 따라 출현 속도와 시간적 균일성이 서로 다르게 반응할 수 있음을 보여준다.
실제 유묘 생산의 관점에서 부분 파상 처리는 출현 속도와 시간적 균일성을 고려할 때 유용한 처리 후보로 판단된다. 종피 제거는 출현을 가장 빠르게 촉진하였으나 CVt가 유의하게 증가한 반면, 부분 파상 처리는 출현 시기를 단축하면서도 CVt를 유의하게 증가시키지 않았다. 다만 본 연구에서는 처리시간, 노동력, 대량처리 효율 및 종자 손상률을 직접 평가하지 않았으므로, 실제 육묘과정에서의 적용을 위해서는 이러한 실용적 요소에 대한 추가적인 검토가 필요하다. 따라서 하늘타리 종자의 균일하고 신속한 유묘 생산을 위해서는 GA3 침지 처리보다 종피에 물리적 변화를 주는 처리가 더 효과적인 접근이 될 수 있다. 다만 본 연구는 단일 종자 로트와 제한된 육묘 환경에서 수행되었으며, 종피 처리에 따른 출현 반응을 평가하는 데 중점을 두었다. 따라서 종피의 기계적 특성이나 처리에 따른 종피 구조의 변화는 본 연구의 평가 범위에 포함되지 않았다. 향후에는 기존에 개발된 종피 파상 기술과 관련 장비의 하늘타리 종자에 대한 적용 가능성을 검토함으로써 종자 손상을 최소화하면서 대량 처리가 가능한 파상 방법을 보다 효율적으로 확립할 수 있을 것으로 기대된다.
종합하면 본 연구 결과는 하늘타리 종자의 출현 지연에 초기 수분 흡수와 유묘 출현에 영향을 미치는 종피 관련 요인이 중요하게 관여함을 보여주었으며, 부분 파상 처리는 이러한 제약을 완화할 수 있는 유용한 처리로 판단된다.
적 요
하늘타리(Trichosanthes kirilowii Maxim.)의 효율적인 증식을 위해서는 신속하고 균일한 유묘 출현이 중요하다. 본 연구에서는 지베렐린산(GA3) 침지 및 종피 처리가 하늘타리 종자의 수분 흡수와 유묘 출현 특성에 미치는 영향을 평가하였다. 종자 활력과 실험실 조건에서의 최종 발아율은 각각 84%와 86.0%였다. 부분 파상 처리는 초기 수분 흡수를 촉진하여 침지 1일 후 수분 흡수율이 무처리 종자의 29.5%에 비해 65.1%로 높았으며, 처리 간 유의한 차이는 침지 초기 2일 동안에만 나타났다. 100–500 ㎎·L-1 GA3 침지 처리는 최종 출현율, 최종 출현수의 50%에 도달하는 시간(E50) 및 평균출현일수(MET)를 유의하게 개선하지 못하였다. GA3 500 ㎎·L-1 처리구는 무침지 대조구보다 출현개시일이 빨랐고 출현시간 변이계수(CVt)가 높았으나, 두 지표 모두 증류수 침지 대조구와는 유의한 차이가 없었다. 종피 처리는 최종 출현율에는 유의한 영향을 미치지 않았으나, MET는 무처리 종자의 21.5일에서 부분 파상 처리 종자의 17.9일 및 종피 제거 종자의 15.7일로 단계적으로 단축되었다. 종피 제거 종자는 가장 빠르게 출현하였으나 CVt가 유의하게 증가한 반면, 부분 파상 처리는 CVt의 유의한 증가 없이 출현 시기를 앞당겼다. 이러한 결과는 하늘타리 종자의 출현 지연에 종피와 관련된 요인이 관여함을 시사하며, 부분 파상 처리가 본 실험 조건에서 유묘 출현을 촉진하기 위한 유용한 처리 후보임을 보여준다.